Atlas des Monferrato
Molare: Sehenswürdigkeiten, Geschichte und Routen
Alessandria
Ein näherer Blick
Molare entdecken
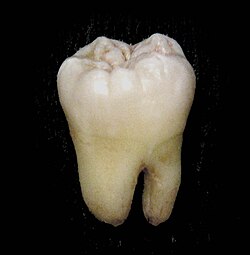
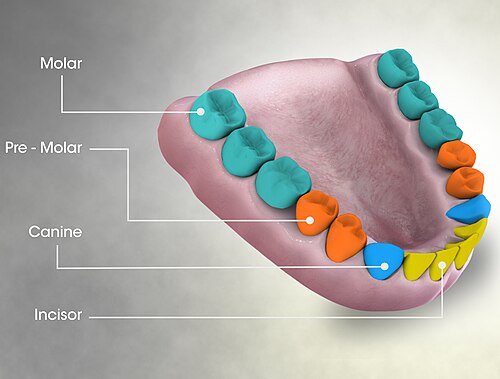
DAS Molaren, oder Zähne MolarB. große Zähne mit einer relativ großen und abgeflachten Oberfläche, die sich im hinteren Teil des Mundes befinden. Sie werden vor allem bei Säugetieren entwickelt und erfüllen hauptsächlich die Funktion, beim Kauen Nahrung zu zermahlen. Der Begriff "molar" kommt aus dem Lateinischen Molaris dens, «millstone-shaped tooth», aus Mole, «millstone», e Dens, «Zahn». In verschiedenen Gruppen von Säugetieren haben Molaren eine bemerkenswerte Vielfalt an Formen und Größen. Beim Menschen kann der dritte Molarenrest vorhanden sein.
Anatomie des Menschen
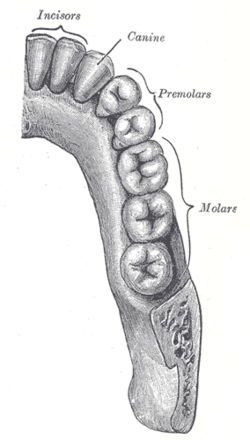
Im Menschen besitzen Molaren im Allgemeinen vier oder fünf Kuspiden. Die Erwachsenenverzahnung besteht aus zwölf Molaren, die in vier Dreiergruppen im Teil angeordnet sind.Kapitel entdecken
Im Menschen besitzen Molaren im Allgemeinen vier oder fünf Kuspiden. Die Erwachsenenverzahnung besteht aus zwölf Molaren, die in vier Dreiergruppen auf der Rückseite des Mundes angeordnet sind. Der dritte Molar, der sich in jeder Gruppe posteriorer befindet, wird als Urteilszahn. Es ist der letzte Zahn zu erscheinen und bricht durch das Zahnfleisch im Allgemeinen um das Alter von zwanzig Jahren, obwohl das Alter der Eruption variiert stark zwischen Individuen und Populationen. In vielen Fällen fehlt der Zahn vollständig.[1]
Der menschliche Mund umfasst obere Molaren oder Kiefermänner und untere Molaren oder Unterkiefer. Sie sind die ersten, die zweiten und dritter Backen Erster, zweiter und letzter dritter molarer Mandibular.
Evolution bei Säugetieren
Bei Säugetieren stellt die Krone der Molaren und Prämolaren eine Vielzahl komplexer Formen dar. Die Schlüsselelemente der Krone sind die mehr oder weniger konischen Vorsprünge...Kapitel entdecken
Bei Säugetieren stellt die Krone der Molaren und Prämolaren eine Vielzahl komplexer Formen dar. Die Kernelemente der Krone sind mehr oder weniger konische Vorsprünge, die als Kuspide und Vertiefungen bezeichnet werden, die sie trennen. Die Kuspide bestehen sowohl aus Dentin als auch aus Email, während die unteren Vorsprünge der Krone, die sogenannten Kräuselungen, aus Variationen in der Dicke des Emails resultieren. Manchmal verbinden sich die Kuspiden, indem sie Grate bilden oder sich ausdehnen, was zu größeren Reliefs führt. Die Spuren sind oft unvollständige Kämme, die die Basis der Krone umgeben.[2]
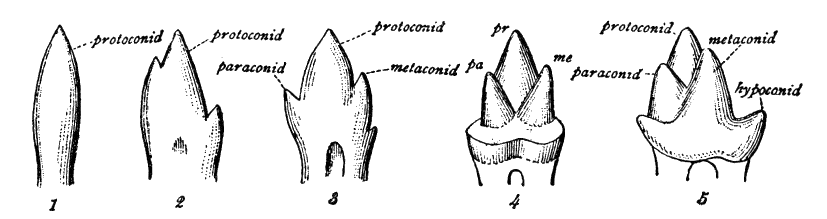
Die multikuspidalen Hinterzähne von Säugetieren würden sich wahrscheinlich aus den monokupidalen Zähnen von Sinapsiden entwickeln. Die Vielfalt der Molarenkonfigurationen von Therapsiden und die Komplexität der Molaren älterer Säugetiere machen es jedoch schwierig, diesen Prozess genau wieder aufzubauen. Nach der heute weithin akzeptierten Differenzierungstheorie würden zusätzliche Kuspide durch Edelsteine oder Ausscheidungen der Krone gebildet. Die konkurrierende Theorie von Concrescence legt nahe, dass komplexe Zähne aus der Fusion konischer Zähne entstanden sind, die ursprünglich getrennt wurden. Es wird allgemein angenommen, dass die Teri-Säugetiere, einschließlich Placentati und Marsupiali, von einem Vorfahren abstammen, der mit tribosphenischen Hinterzähnen versehen ist, die durch drei im Dreieck angeordnete Hauptpunkte gekennzeichnet sind.[2]
Morphopathologie
Drei-bosphenische Molaren · Quadratmolaren · Bunodorierende MolarenKapitel entdecken
Jeder Hauptpunkt eines oberen Molaren wird als Kegel angezeigt und durch ein Präfix identifiziert, das von seiner relativen Position auf dem Zahn abhängt: proto-, Para., Meta-, Ipo... und - Tut mir leid.. Diesen Namen werden spezielle Suffixe hinzugefügt. Das Suffix -Id wird für niedrigere Molaren verwendet, wie im Fall von Protoconid, während -ulo oder -Ulid einen kleineren Höcker, wie im Protokonulo oder im Protokonulid, anzeigt. Ein Kamm ähnlich einem Regal, das sich am Boden der Krone eines oberen Molaren befindet, wird Cingol genannt; Die entsprechende Struktur eines unteren Molaren trägt den Namen Cingulid. Eine kleine Höckerstelle, die sich auf diesen Strukturen befindet, kann als Zyngolar-Höcker, Conulo oder Konulid definiert werden.[3]
Drei-bosphenische Molaren
Der tribosphenische Molar gilt als eine der wichtigsten Eigenschaften der Teri-Säugetiere. Unter den lebenden Säugetieren ist diese Art von Zahn bei den meisten insektenfressenden Säugetieren und jungen Ornitorinen vorhanden, obwohl erwachsene Individuen dieser Spezies keine Zähne haben.
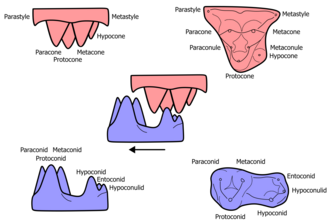
Bei tribosphenischen Zähnen wird der untere Molar in zwei Regionen unterteilt: Trigonid, ausgestattet mit drei Höckern und spezialisiert auf Schneiden, und die Talonide, den zum Zerkleinern verwendeten hinteren Teil. In modernen tribosphenic Molaren, die Trigonid gegenüber dem vorderen Teil des Unterkiefers, während die Talonid posterior befindet. Die Trigonide wird durch drei große Höcker begrenzt: die Protokonide, die sich auf der bukkalen oder labialen Seite des Zahns befindet und der Wange zugewandt ist, und die vordere Parakonide und die hintere Metakonide, beide auf der lingualen Seite, die der Zunge zugewandt ist.
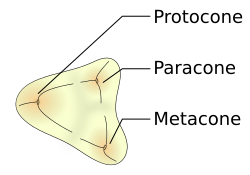
Die oberen Molaren können mit Bergketten mit drei Spitzen verglichen werden, mit einer spiegelnden Anordnung als die unteren Molaren. Der Protokono befindet sich auf der Zungenseite des Zahns, während sich der vordere Parakono und das rückwärtige Methan auf der bukkalen Seite befinden. Der obere molare Protokon ist in die untere molare Thaladonid-Depression eingebettet und bildet ein Zerkleinerungssystem, das mit einem Mörtel mit Stößel vergleichbar ist.
Die tribosphenischen Molaren waren in den direkten Vorfahren aller drei Hauptgruppen lebender Säugetiere vorhanden, stellten aber wahrscheinlich nicht die angestammte Bedingung der gesamten Klasse dar. Nach Ansicht vieler Paläontologen hätte sich diese Struktur bei Monotremisten unabhängig von den Australosfeniden entwickelt, anstatt von einem gemeinsamen Vorfahren geerbt zu werden, der mit Beuteltieren und Plazentati geteilt wurde, die von den Borospheniden abstammten. Diese Interpretation behält jedoch einige Gegner.[4] Die Ablösung des Monotrems der unteren Kreidezeit St.ist beispielsweise ähnlich wie die von Peramus und Driolestoide, was darauf hindeutet, dass Monotreme mit einigen prätribosphenischen Säugetieren verwandt sein können.[5] Die systematische Position dieser Gruppen ist jedoch noch nicht endgültig festgelegt.
Einige Juror-Säugetierformen, wie die Docodonti und shuotheriids, besaßen Molaren definiert tribosphenic inversi, in dem sich eine Struktur ähnlich wie Thaladonid an der Vorderseite des unteren Molaren anstelle von im hinteren entwickelte. Diese Konfiguration wird als Beispiel für eine konvergente Evolution angesehen.[6]
Quadratmolaren
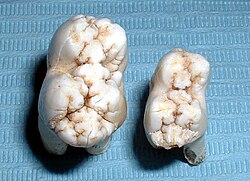
Ausgehend vom primitiven tribosfenischen Zahn haben sich die Molaren diversifiziert und nehmen zahlreiche spezielle Morphologie an. In vielen Gruppen wurde ein vierter Punkt entwickelt, genannt Hypocono in den oberen und Hypoconid Molaren in den unteren. Die quadratischen Molaren, auch Quadritubercolati oder heutemorphe genannt, haben einen Hypocono, das ist ein zusätzlicher vierter Kuspid auf der Zungenseite des oberen Molaren, posterior zum Protokon. Die quadratischen Molaren tauchten früh in der Evolution von Säugetieren auf und sind in zahlreichen Arten vorhanden, darunter Locken, Waschbären und viele Primaten, einschließlich des Menschen.[7] In manchen Fällen kann es auch eine fünfte Höcker geben.
Bei vielen Säugetieren erscheinen die kleineren Headsets auch als Conuli bezeichnete kleinere Höcker, die nach ihrer Position benannt werden. Der Parakonul befindet sich beispielsweise zwischen dem Parakono und dem Methan, während sich das Hypokonulid zwischen der Hypokonide und dem Entokonid befindet.[7]
Bunodorierende Molaren
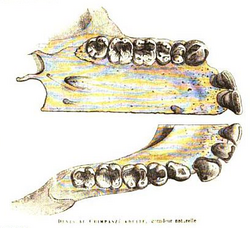
In den dunklen Molaren sind die Kuspiden niedrig und abgerundet, ähnlich wie kleine Reliefs, anstatt hoch und spitz. Diese Morphologie ist besonders häufig bei Allesfressern wie Schweinen, Bären und Menschen.[7] Die bunodontischen Molaren sind wirksame Zerkleinerungswerkzeuge und haben oft eine viereckige Gesamtform.[8]
Ipsodorantbeugend
Die hypsodonten Zähne zeichnen sich durch hohe Kronen und eine Schmelzschicht aus, die sich deutlich unter das Zahnfleisch erstreckt und eine größere Menge an Material zur Verfügung stellt, um den Verschleiß auszugleichen.[9] Beispiele für Tiere mit ipsodonter Zahnung sind Rinder und Pferde, die sich von pflanzlichem Fasermaterial ernähren und oft durch abrasive Partikel kontaminiert sind. Bei einigen Arvicolinae-Arten, einer Unterfamilie pflanzenfressender Nagetiere, können Molaren während ihres gesamten Lebens weiter wachsen.[7]
In ipsodonten Molaren ist es nicht immer möglich, eine Krone und einen Kragen klar zu unterscheiden. Die okklusale Oberfläche ist rauh und hauptsächlich flach, um das Pflanzenmaterial zu zerkleinern und zu mahlen. Der Körper des Zahns ist sowohl oberhalb als auch unterhalb des Zahnfleischrandes mit Zement bedeckt. Unterhalb des Betons befindet sich eine Emailschicht, die sich entlang des Zahnkörpers erstreckt. Zement und Email bilden Falten innerhalb der dicken Dentinschicht.[10]
Brachydantbein
Der Zustand, der der Hypnodontie entgegengesetzt ist, wird Brachidontie oder Brachiodontie genannt, aus dem Griechischen ♪, «kurz». Es ist eine Art von Gebiss, die durch Zähne mit niedrigen Kronen gekennzeichnet ist. Menschliche Zähne sind brachydont.[7]
Ein Brachydon-Zahn besitzt eine Krone, die sich über dem Zahnfleisch befindet, einen Kragen unmittelbar darunter und mindestens eine Wurzel. Eine Schicht Emaille bedeckt die Krone und reicht bis zum Kragen, während Zement nur unterhalb des Zahnfleischrandes vorhanden ist. Occlusale Oberflächen neigen dazu, erkannt oder spitz zu werden und sind bei Fleischfressern besonders geeignet, Beute zu halten und Gewebe zu zerreißen oder zu entminutieren.[10]
Molares zalambdodo
Die oberen Molaren zalambdonti haben mindestens drei Hauptkuspide: eine größere auf der Zungenseite und zwei kleinere auf der Labiale-Seite. Die größere Kuppe ist mit den anderen beiden durch Kamme verbunden, die ein schmales V oder eine Figur ähnlich dem griechischen Buchstaben λ, Lambda bilden. Der Begriff "zalambdonte" bedeutet in etwa "stark mit lambdaförmigen Zähnen versehen". Unter den lebenden Säugetieren sind zalambdonti Molaren in tenrec, golden mol, sunnodon und Beutelmole vorhanden.[3][11]
In zalambdonti Plazentaten wird die große innere Spitze zum tribosfenic oberen Molarenparacono homologated, während das Methan abwesend ist, reduziert oder mit ihm verschmolzen. Marsupial Maulwürfe zeigen den gegenteiligen Zustand: die größere Höcker entspricht dem Methan, während es der Parakon ist abwesend zu sein. Der Protokono kann ganz fehlen, wie in einigen goldenen Mol und in einigen tenrec, oder zu einem kleinen vierten Höcker reduziert werden, der sich zungenförmig im Vergleich zu den großen Höckern auf dem Gipfel von V befindet. Die beiden Labyrinthwürfel werden auf einer breiten Plattform namens Stylus Regal platziert. In den unteren Molaren ist Thalid reduziert oder abwesend, da es seine Funktion als Quetschbecken gegenüber dem Protokon verloren hat.[3][11] Die Zalambdodontie reduziert den Kontakt zwischen Zähnen auf einige einfache scharfe Oberflächen, obwohl der evolutionäre Vorteil dieser Morphologie noch nicht ganz klar ist.[11]
Molaren dilambdodonti
Wie zalambdonti Molaren, auch Dilambdonte Molaren haben eine gut entwickelte ectolofo, aber seine Form ähnelt zwei Lambda-Buchstaben flankiert oder ein W. Auf der Zungenseite, im unteren Teil des W, finden Sie Methan und Paracono, während sich das Stylusregal auf der Labiale-Seite befindet. Der Protokono ist auf der Zungenseite in Bezug auf den Eclope vorhanden. Die Dilambdonti-Molaren sind im Toporagni, in den Molen und in einigen insektenfressenden Fledermäusen vorhanden.[7]
Molare Lophonie
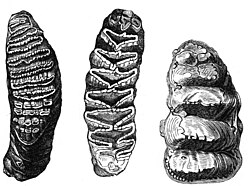
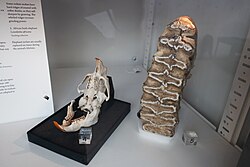
Die Lophodondzähne sind leicht erkennbar an den charakteristischen Systemen von Emaillkammen, sogenannten Lophies, die unter ihnen die Kronenspitze verbinden. Diese Systeme sind in den meisten Pflanzenfressern vorhanden und können aus einem einfachen ringförmigen Rand, wie Rattentalpa, oder einer komplexen Abfolge von Längs- und Querkämmen bestehen, wie bei den Perissodactylhuftieren, einschließlich Equiden.[8]
Die lahmenden Molaren weisen harte und längliche Schmelzstege auf, die parallel oder senkrecht zur Zahnreihe orientiert sind. Sie sind bei Pflanzenfressern üblich, die das Essen gründlich zerkleinern. Beispiele für Säugetiere mit Molaren sind Taphire, Lamantine und zahlreiche Nagetiere.[7]
Wenn zwei Lafies Querkämme bilden, oft bogenförmig oder fast anular, ist die Disposition definiert Bilophon. Diese Konfiguration ist bei Primaten üblich, erscheint aber auch bei Hasen, Kaninchen und Pica sowie bei einigen Nagetieren.[7][8]
Die extremen Formen der Lophodontie, die bei Elefanten und einigen Nagetieren vorkommen, wie z. B. bei denen der Gattung OtomieSie werden Loxodontia genannt.[7] Der Name der Gattung kommt von dieser Eigenschaft. Loxodontie, zu dem afrikanische Elefanten gehören.
Selenodontische Molaren
Denti secodonti
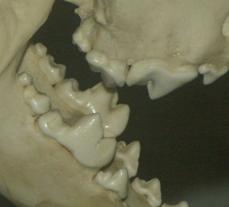
Viele fleischfressende Säugetiere haben vergrößerte Zähne und ähnliche Klingen, spezialisiert auf das Schneiden und Handen von Fleisch, genannt fleischliche Zähne. Der allgemeine Begriff, der verwendet wird, um Zähne mit dieser laminaren Morphologie anzuzeigen, ist secodonte oder plagiaulacoide.[7]
Notizen
Kapitel entdecken
- ^ E. Rozkovcová, M. Marková und J. Dolejsí, Studien zur Agenese von dritten Molaren unter Populationen unterschiedlicher Herkunft, In Sbornik Lekarsky, vol. 100, nein. 2, 1999, S. 71-84, PMID 11220165.
- ^ Zu B Zhao, Weiss und Stock, 2000, p. 154.
- ^ Zu B C Myers, Espinosa, Parr e Jones, 2013b.
- ^ Stokstad, 2001.
- ^ Luo, Cifelli und Kielan-Jaworowska, 2001.
- ^ Luo, Ji und Yuan, 2007.
- ^ Zu B C D Und F G H Die J k Myers, Espinosa, Parr e Jones, 2013a.
- ^ Zu B C D Jurist, 1979, pp. 13-14.
- ^ Flynn, Wyss und Charrier, 2007.
- ^ Zu B Paul W. L. Kwan, Verdauungssystem I (PDF), hoch ocw.tufts.eduTufts University, 2007. Abgerufen am 18. Mai 2013 (archiviert vonOriginal-URL am 13. September 2012.
- ^ Zu B C Robert J. Asher und Marcelo R. Sánchez-Villagra Sich selbst aussperren: Vielfalt unter zahnärztlichen zalambdodontischen therischen Säugetieren, In Journal of Mammalian Evolution veröffentlicht, vol. 12, nein. 1-2, 2005, S. 265-282, DOI:10.1007/s10914-005-5725-3ISSN 1064-7554 (Toilette · ACNP).
Bibliographie
Kapitel entdecken
- John J. Flynn, André R. Wyss und Reynaldo Charrier, Südamerikas vermisste Säugetiere, In Wissenschaftlich und technisch, vol. 296, n. 5, Mai 2007, S. 68-75, Bibcode:2007SciAm.296e..68F, DOI:10.1038/scientificamerican0507-68, OCLC 17500416, PMID 17500416. Abgerufen am 11. Mai 2013.
- T. E. Rechtsanwalt, Das Säugetier-Skelett (PDF), In Handbuch zu den Ordnungen und Familien der lebenden SäugetiereMad River Press, 1979, ISBN 978-0-916422-16-5, OCLC 5763193. Abgerufen 12. Mai 2013 (archiviert vonOriginal-URL am 1. Juli 2010.
- Zhe-Xi Luo, Richard L. Cifelli und Zofia Kielan-Jaworowska Dualer Ursprung tribosphenischer Säugetiere, In Natur, vol. 409, n. 6816, 4. Januar 2001, S. 53-57, Bibcode:2001Natur.409...53L, DOI:10.1038/35051023, PMID 11343108.
- Z.-X. Luo, Q. Ji und C.-X. Yuan, Konvergente zahnärztliche Anpassungen bei pseudo-tribosphenischen und tribosphenischen Säugetieren, In Natur, vol. 450, nein. 7166, November 2007, pp. 93-97, Bibcode:2007Natur.450...93L, DOI:10.1038/nature06221, PMID 17972884.
- P. Myers, R. Ausstellung, C. S. Parr, T. Jones, G. S. Hammond und T. A. Dewey, Die Grundstruktur der Wangenzähne, hoch animaldiversity.ummz.umich.eduAnimal Diversity Web, University of Michigan, 2013a. Abgerufen 12. Mai 2013.
- P. Myers, R. Ausstellung, C. S. Parr, T. Jones, G. S. Hammond und T. A. Dewey, Die Vielfalt der Wangenzähne, hoch animaldiversity.ummz.umich.edu, Animal Diversity Web, University of Michigan, 2013b. Abgerufen 12. Mai 2013 (archiviert vonOriginal-URL am 5. April 2013.
- E. Stokstad, Zahntheorie revidiert die Geschichte der Säugetiere, In Wissenschaft, vol. 291, n. 5501, Januar 2001, S. 1. 26, DOI:10.1126/science.10.1126/science.291.5501.26, PMID 11191993.
- Z. Zhao, K. M. Weiß und D. W. Bestand. Entwicklung und Evolution von Gebissmustern und ihrer genetischen Basis, in Mark F. Teaford, Moya Meredith Smith und Mark W. J. Ferguson (Hrsg.), Entwicklung, Funktion und Evolution der Zähne, Cambridge University Press, 2000, S. 152-172, ISBN 978-0-511-06568-2.
Übernachten · Molare
Unterkünfte auf Booking.com suchenGeschichten, Orte und Menschen
Mehr über Molare und seine Umgebung
Folge einer Spur der Geschichte und entdecke, wohin sie dich führt.
Molare tribosfenico
Die Form der drei Höckermolaren, die als eine der wichtigsten Eigenschaften von Säugetieren gilt, wird Tribosfen genannt und ermöglicht eine höhere Effizienz beim Kauen von Lebensmitteln, indem sie eine Schneidefunktion und eine Zerkleinerungsfunktion kombiniert.
Die Geschichte lesen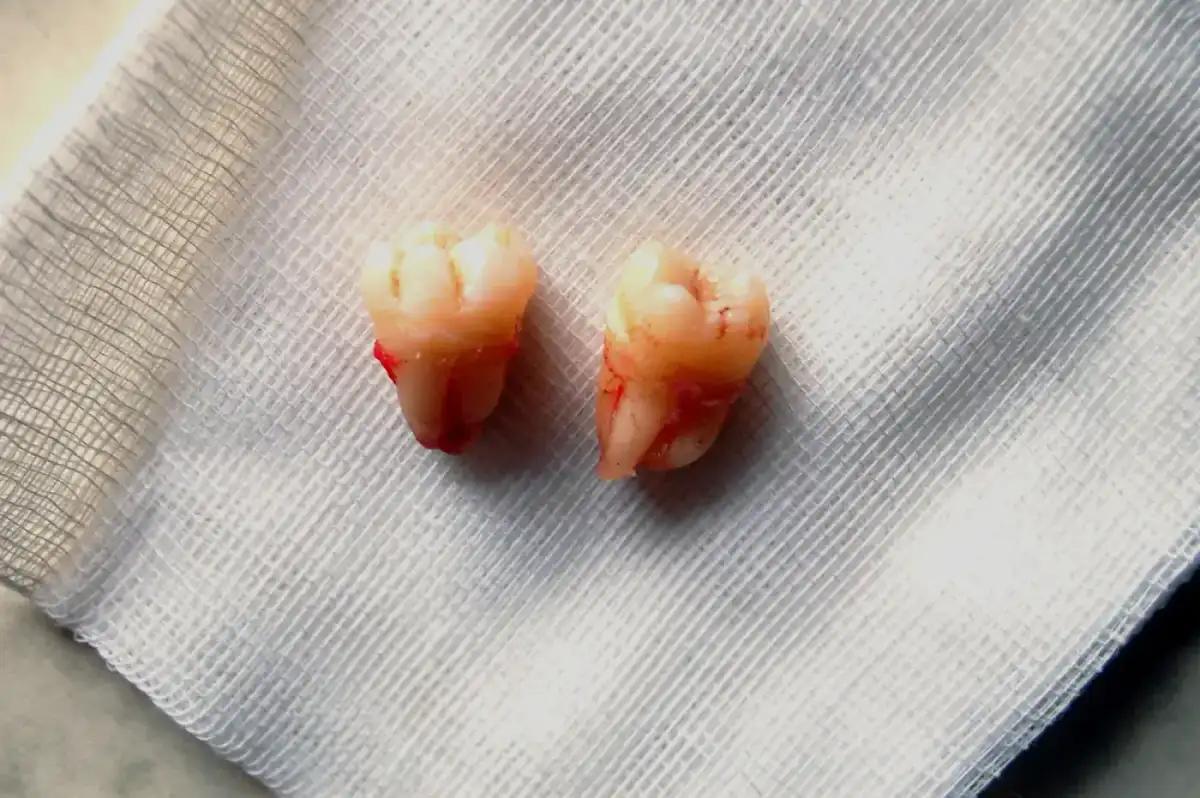 Steven Fruitsmaak · Public domain
Urteilszahn
Einer der drei Molarenzähne, die in jedem der vier Quadranten der menschlichen Verzahnung vorhanden sind, ist einer der drei Molarenzähne. Indem man die letzte und damit innerere Position im Zahnbogen einnimmt, werden die Zähne des Urteils auch achtzig genannt.
Die Geschichte lesenAlveolith (odontoiatric)
In der Zahnheilkunde ist Alveolith eine Komplikation, die während einer zahnärztlichen Extraktion auftritt und 1-2% aller Fälle abdeckt. Es gibt eine größere Häufigkeit bei der Extraktion von Molaren .
Die Geschichte lesenDie Region, Schritt für Schritt